Коммуникация животных как «предмет роскоши»

 Print
 PDF
Высокая стереотипность исполнения демонстраций, организованность обмена ими во взаимодействиях (наличие «синтаксиса», предсказуемо развивающегося во времени), требуют заведомого избытка ресурсов — пищи, времени, и безопасности. В противоположность человеческому общению1, коммуникация животных своего рода «предмет роскоши»: реализуется там и тогда, где есть этот избыток, обеспеченный благоприятной средой обитания и/или специальными усилиями особи в прошлом, заранее выбравшей подходящее время и место будущих взаимодействий.
Если нет — животное не включается в коммуникацию и, оставаясь вне одноимённой сети, не навлекает попыток «втянуть» во взаимодействия (скажем, демонстраций угрозы от резидентов). При занятии осенне-зимних территорий в августе-сентябре большие пëстрые дятлы концентрируются (а тем более охраняют занятое пространство, патрулируют границы и пр., т.е. проявляют территориальность хотя бы частично) лишь там, где урожая семян достаточно до весны. В противном случае они пополняют состав «проходящих» особей; поэтому в марте-апреле внутри территорий ещё сохраняется много нетронутых шишек с семенами. Подобный избыток виден и в случае, когда — при меньшей плотности населения— птицы не охраняют участок2.
Поэтому между взаимодействиями животное вынуждено кормиться в той части участка и такими кормовыми методами, чтобы до их начала гарантированно «собрать» искомый излишек; если оно не выходит из-за непогоды, субоптимальных биотопов и пр., взаимодействия просто не начинаются, социальная активность подавлена. Также и с безопасностью: риск хищничества сокращает время, доступное стереотипному исполнению демонстраций; начиная его, особь вынуждена в предшествующий период вести себя так, чтобы гарантировать себе несокращение времени, доступного для демонстрирования, из-за опасности или беспокойства. Скажем, найти на участке «островки» наименьшего риска и их держаться, используя как базу операций для «вылазок» в наиболее опасные места.
Фактически это значит, что демонстрирование во взаимодействиях, включающее индивида в общую коммуникативную сеть, представляет собой классический гандикап по Амосу Захави. Или (смотря «со стороны» популяционной организации вида) они — групповая адаптация, только реализуемая индивидуальной активностью с «нужной» степенью точности (как бы беря видовые демонстрации в лизинг), ане их собственный выбор в пользу «честных сигналов» и против «обмана». Сравни с данными об «обмане» в коммуникации и положительной связи рискованности демонстраций с эффективностью их как сигналов.
Если ресурсов просто достаточно (не говоря о нехватке), то у птиц, млекопитающих, ящериц социальную жизнь вытесняет самообеспечение; пары тогда образуются, территории распределяются и пр. «экономным способом», при минимуме контактов и без коммуникации, просто по факту наличия данных особей в данном месте.
Эту «редукцию коммуникации» к территориальных видов воробьиных обычно фиксировали на краю ареала, в самых экстремальных и/или нестабильных условиях существования вида, либо при затяжной непогоде, предельно понизившей доступность корма. Так, это фиксировалось Е.Н.Пановым (1978, с. 118) в популяции черношейной каменки Oenanthe finschi на полуострове Мангышлак.
«Первое появление самки на территории холостого самца произошло 27 марта, в день резкого похолодания и снегопада, и вообще не сопровождалось какими-то яркими демонстрациями, не считая одной эпизодической позы типа 18 и девяти коротких песен со стороны самца. Из высокопороговых ЭДА [маркирующих высокие уровень общего возбуждения и готовность особи к продолжению социальных взаимодействий, обычно также уже существующую вовлечённость в них] лишь несколько раз регистрировалось разворачивание рулевых в позе типа 11. Трижды самец пытался продемонстрировать трепещущий полёт.
Обе птицы были подавлены. У самки была повреждена (вероятно отморожена) лапа и она непрерывно кормилась. Самка проявляла тенденцию сблизиться с самцом, который никак не реагировал на эти попытки».
«Экономность» — в образовании пар без типичных, статистически свойственных ему демонстраций или с сильно обеднённым репертуаром. В отсутствие коммуникации контакт не перерастает во взаимодействие, где как минимум значимо обоюдное управление чужим поведением, т.е. «перекрёстные влияния» в процессе взаимодействия (и они часто более значимы, чем влияния «продольные» — детерминация будущих выборов поведения прошлыми актами). «Экономная» территориальность — в эпизодических демонстрациях владельцев участка в одной точке вместо полноценной охраны пространства и/или патрулирования границ. Это отмечено, скажем, в разреженных осенне-зимних поселениях больших пёстрых дятлов, см. «Зачем большим пёстрым дятлам всю зиму охранять территории».
Лишение самцов обыкновенного тритона пищи на 24 ч и на 48 ч. снижает стереотипность исполнения видовых демонстраций и резко ослабляет интерес к ухаживанию из-за усиления пищевой мотивации. Упитанные самцы при ухаживании полностью игнорируют охоту; они не просто более сексуально активны в присутствии самки, но точней и стереотипней исполняют брачные демонстрации, почему их взаимодействия успешней, короче, реже прерываются всплытием для дыхания и пр. (Ranta et al., 1987).
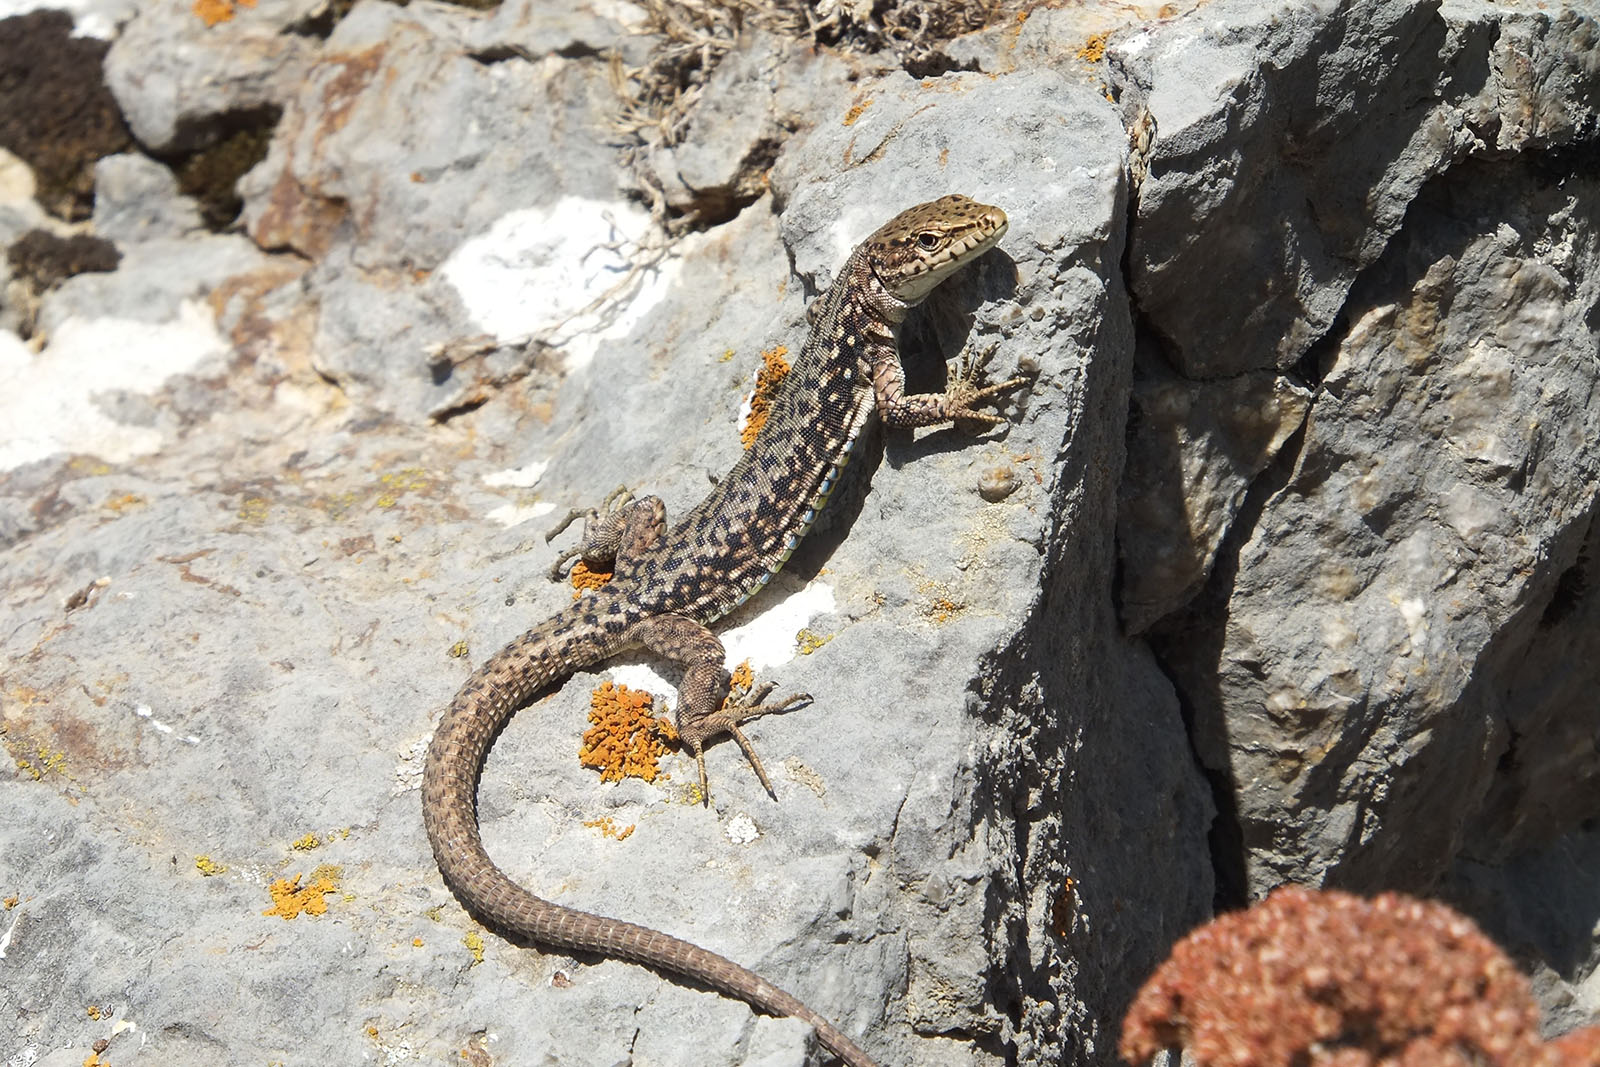
У серого варана Varanus griseus и скалистой ящерицы Браунера Lacerta saxicola сложная социальная организация (групповая территориальность самцов при социальная полиандрии у V.griseus; индивидуальная территориальность при социальная моногамии у L.saxicola) возникает только при избытке ресурсов. Тогда у обоих видов отмечены: парцеллярная пространственная организация с персонализацией отношений; полная реализация видового репертуара сложного социального поведения; низкая доля агрессивных взаимодействий; высокая сложность социальной структуры (количество статусов) при низком разнообразии стратегий эксплуатации ресурсов (Целлариус, Целлариус, 2005, 2006).
В случае уменьшения обилия ресурса, животные не сразу переключаются на альтернативы (хотя могли бы использовать их немедленно), а резко увеличивают размеры участков обитания в попытках привести его в соответствие с изменившимся состоянием «привычного» ресурса. Это меняет частоту и длительность контактов между членами социума, разрушает парцеллы, структуру территорий в них, ослабляет или рвëт большинство связей между индивидами. Сформировавшееся ранее социальное поведение оказывается неадекватным изменившейся социальной обстановке. Всё это исключает из воспроизводства ранее «привилегированных» особей и даже совсем прекращает размножение. Регламентация и дифференциация доступа к ресурсам снижаются, затем почти исчезают, одновременно растёт число агрессивных взаимодействий, снижаются сложность социума и разнообразие социального поведения. На этом же этапе резко увеличивается разнообразие стратегий поиска ресурса (Целлариус, Целлариус, 2005, 2006).
В дальнейшем социальная организация стабилизируется, но на более низком уровне сложности. Размножение возобновляется, причем приобретение особями новых статусов во многом случайно. Доступ к ресурсам, включая спаривание, здесь слабо связан с социальным статусом и зависит от физических возможностей ящериц и индивидуальных стратегий поведения (Целлариус, Целлариус, 2005б, 2006).
Действительно, при резком и устойчивом падении ресурсообеспеченности ящерицы резко сокращают демонстрирование и обмен воздействиями даже в совершенно специфических ситуациях, казалось бы, требующих этого. Коммуникация прерывается, прекращается направленный информационный обмен.
Биологически осмысленный результат «экономных» контактов достигнут просто благодаря случайно возникшему «единству места и времени» в активностях участников: данная самка случайно осталась на участке данного самца и не была изгнана, эти самцы избрали случайно именно эту точку границы для рекламирования и пр. Дальнейшее закрепление этих случайностей создаёт более или менее устойчивый альянс особей, но без социальных связей между ними. Что менее эффективно: не даёт отбору, связанному с данными взаимодействиями3, дифференцировать особей по приспособленности, их размножаемость или смертность здесь не селективны.
И наоборот, эту задачу успешно решает обычная коммуникация, устанавливающая социальные связи между особями, «сталкивающимися» в конкуренции за социальный ресурс (потенциальными партнёрами, владельцами соседних территорий, доминантами и подчинёнными в системе иерархии, носителями других ролей, важных для организации отношений у данного вида и в данном контексте общения, Фридман, 2013). Её течение и результат приводят в соответствие «качества» особей и объёмы ресурсов, доставшихся им в конкуренции, определяя тем самым разницу в приспособленности. Так, репродуктивный успех и жизнеспособность потомства максимальны при выборе партнёра, «оптимального» именно для данной особи, не «самого лучшего» в группе, из которой выбирают. В опытах с Drosophila melanogaster самки одной линии сами выбрали 1 самца из 5 ухаживавших за ними, в другой их случайно сочетали с единственным самцом. В первой жизнеспособность и особенно продолжительность жизни потомства была значимо выше (Promislow et al., 1998).
Преимущества свободного выбора партнёра (-ши) из нескольких ухаживающих особей показаны на двух группах сизарей без полового опыта: «свободного выбора» и «случайного объединения». В первой самцы и самки в общей вольере свободно ухаживали друг за другом, естественно объединяясь в пары; во второй их принудительно ссаживали в небольшой клетке, пока не начнут ухаживания, и дальше пускали в общую вольеру. Критерии образования пары — «поцелуи», демонстрация гнезда и садки на одну и ту же особь минимум 3 наблюдения подряд, если хотя одна из данных форм поведения отмечена в каждом случае (Klint, Enquist, 1981).
Опыты ставили в двух повторностях. В первой в группе свободного выбора было 8 самцов и 7 самок, возникло 7 пар, во второй 5, 10 и 4, случайного — 5 и 6 пар. В первые дни интенсивно ухаживали оба пола. Сперва самец демонстрировал перед каждой самкой, затем возникали индивидуальные привязанности и, наконец, образовывалась пара, но могущая тут же распасться из-за токования «более подходящего» партнёра. После окончательного образования пар в обеих группах их изолировали и позволяли размножиться (Klint, Enquist, 1981).
В свободно соединившихся парах сизари значимо дольше ухаживали до первого яйца, однако они размножались лучше (табл.): раньше приступали к кладке, откладывали больше яиц и меньше неоплодотворённых. При случайности выбора самцы были намного агрессивней и меньше времени уделяли ухаживаниям, данные пары формировались значимо дольше (Klint, Enquist, 1981).
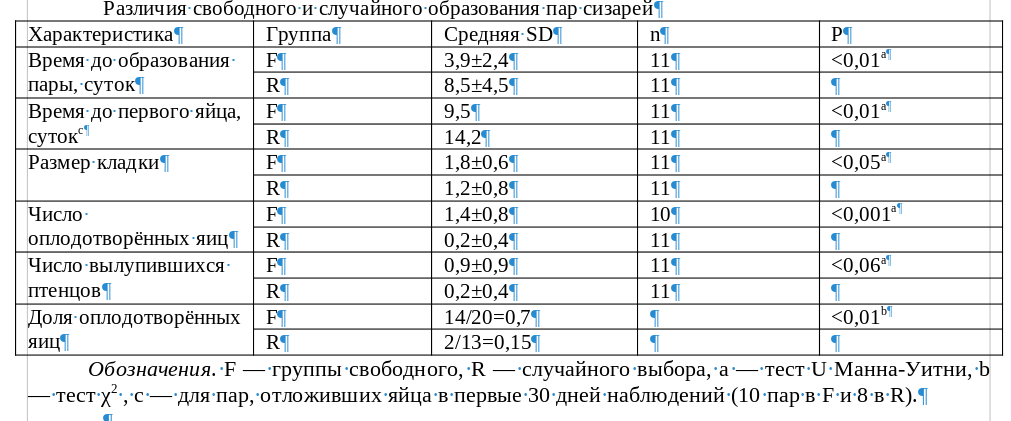 Для противоположного пола привлекательность разных птиц (самцов или самок) резко неодинакова: одним, где она наибольшая, постоянно адресуют ухаживания, другим значимо реже, третьим совсем редко. Важное отличие группы свободного выбора — пары образуют птицы сходного уровня привлекательности, неважно высокой, средней или низкой. В случайном объединении эта конкордантность отсутствовала, почему размножение шло значимо хуже (Klint, Enquist, 1981).
Видно, что организованный обмен демонстрациями — коммуникация «работает» стохастическим регулятором распределения ресурсов, оспариваемых во взаимодействиях, между особями разного «качества». Заведомый избыток ресурсов (включая большее время до достижения результата в сравнении с «экономным способом») нужен именно для установления точного соответствия между «качеством» особей (собравшихся на току, распределяющих территории и пр.) и результатами данной активности. Так, встреча партнёров на токах предполагает более сложные социальные связи самцов (территориальные или основанные на агрессивном доминировании), большие интенсивность демонстрирования, напряжённость конкуренции между полами, большую сконцентрированность взаимодействий в пространстве (и больший риск демонстратора). Тогда можно предполагать, что встречи партнеров на токах потребуют большего избытка корма и/или времени для его ненапряжённого сбора по сравнению с видами без токов. Тогда более сложные формы социальной организации будут коррелировать с питанием более обильными (и, главное, локально обильными) кормами, т.е. с минимумом затрат на доступ и потребление именно в местах самой напряжённой коммуникации.
Это было показано для райских птиц (сем. Paradisaeidae) и шалашников (сем. Ptylonorhynchydae), удобных для данного анализа ввиду значительного числа видов (первые десятки), их существенной морфологической однородности при высоком разнообразии форм территориальности и форм брачных отношений.
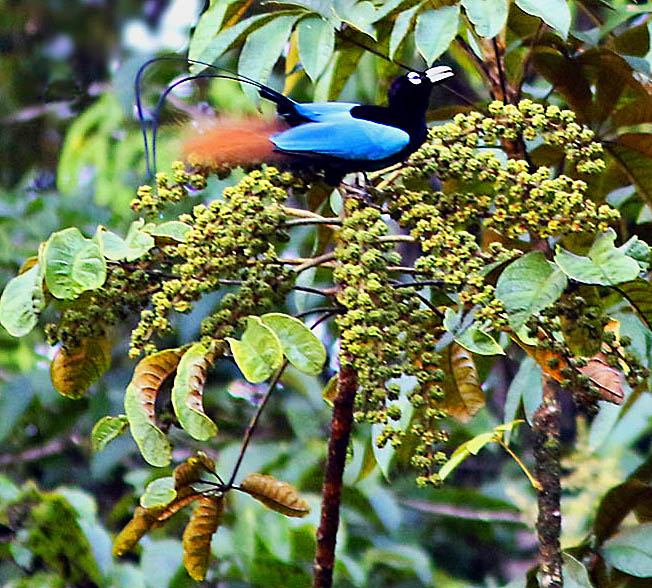
Питание 9 видов райских птиц (вороная Manukodia chalibata и трубящая манукодии M.keraudrenii моногамны, прочие полигамны со встречей партнеров на токах) исследовали на о.Новая Гвинея. Каштановым райским птицам Paradisaea raggiana присущ настоящий коллективный ток, куда собирается больше количество самцов; самцы великолепной райской птицы Diphyllodes magnificus и синезатылочной паротии Parotia lawesi токуют поодиночке на земле (иногда их токовые площадки сближены); самцы райских птиц великолепной щитоносной Ptiloris magnificus, желтохвостой серпоклювой Drepanornis albertisi, чудной и синей Paradisornis rudolphi также поодиночке, но в среднем ярусе леса (Beehler, 1983).
Все райские птицы кормятся стаями, перемещения между кормовым деревом и местом отдыха (откуда уже слетают на ток) часто синхронны и носят характер ложных паник. Главнейшая пища — плоды 31 вида деревьев и кустарников из 14 семейств, каждая потребляет плоды 10-21 видов величиной от 3 до 28 мм в диаметре. Кормовая стратегия своеобразна: птицы кормятся на одном дереве не более 2-4 мин, потом срываются и перелетают на дерево поблизости, отдыхают, чистятся и либо возвращаются кормиться на прежнее, либо летят токовать (Beehler, 1983).
Чем напряженней взаимодействия самцов и самок на току, тем значимей местное изобилие крупных плодов, чтобы быстро наесться в паузах между токованиями, тратя на это минимум времени и максимум — на социальные взаимодействия, могущие занятуться надолго. Для моногамных видов это неважно.
В районе исследований райские птицы едят три группы плодов (рис.1):
1) «фиги» — сочные, сложносоставные, съедаемой целиком,
2) «капсулы» — мякоть защищена несъедобной жёсткой оболочкой,
3) «ягоды» — простые или сложносоставные, относительно жёсткие, но иногда съедобные, с сочной или мучнистой мякотью вокруг семян.
Моногамные виды едят в основном «фиги», полигамные — плоды намного большего числа видов, при явном преобладании «капсул» (Beehler, 1983).
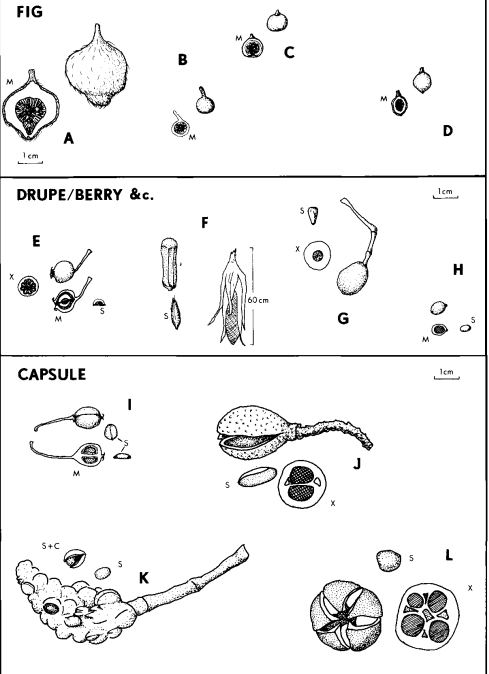
Рисунок 1. Три категории фруктов, потребляемых райскими птицами на ю.-з. склонах г.Миссим, провинция Моробе, Паупуа Нова/я Гвинея (7016′ ю.ш., 146042′ в.д.), наблюдения июля 1978 – ноября 1980 г. Обозначения. Сверху вниз: «фиги», «капсулы», «ягоды», S — семя; M — продольный срез посредине; X — поперечный срез посредине. A. Ficus odoardi. B. F.gul. C. F.#275. D. F.#246. E. Gastonia spectabilis. F. Pandanus conoideus. G. Cissus hypoglauca. H. Endospermum medullosum. I. Homalanthus novoguineensis. J. Dysoxylum cf. macrothyrsum. K. Elmerrillia papuana. L. Chisocheton weinlandii.
Источник: Beehler, 1983.
 А.
 Б.
 В.
Г.
 Д.
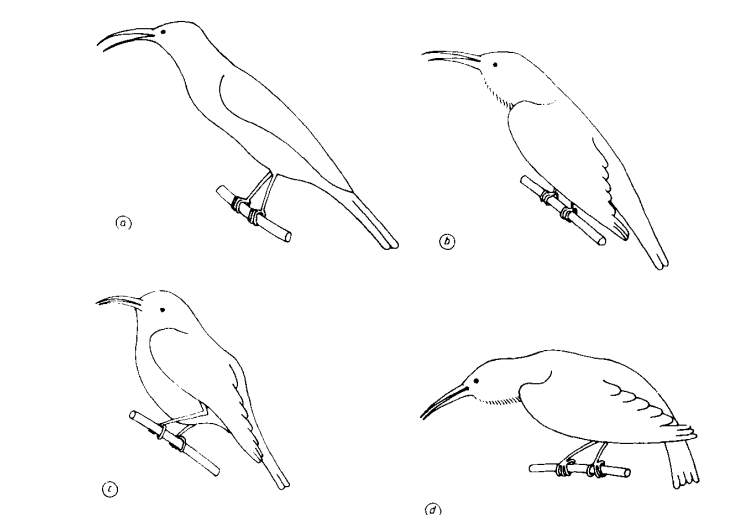
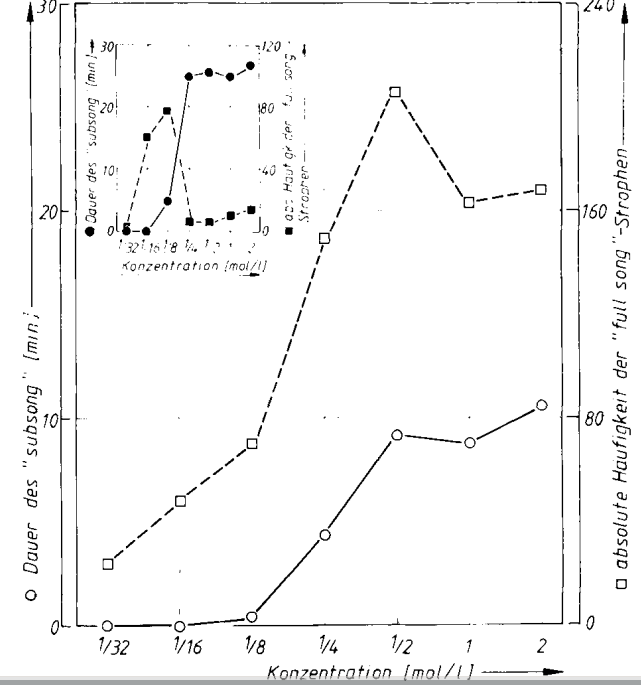
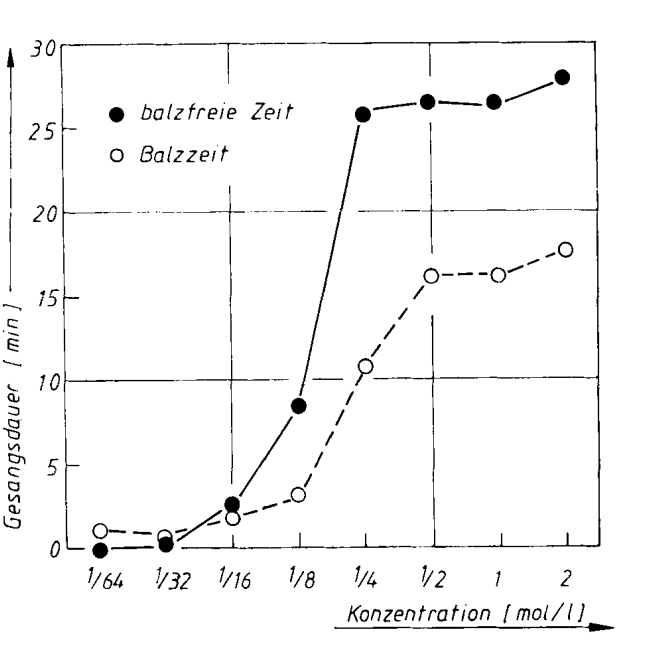
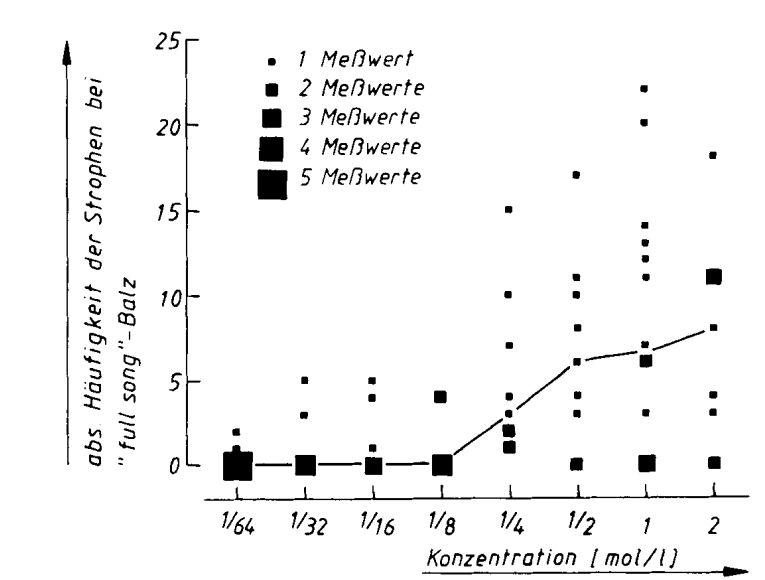
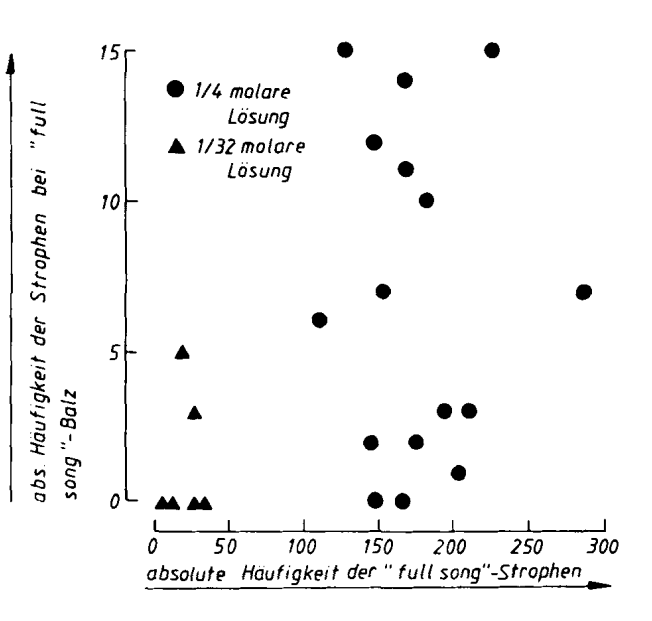
Рисунок 2. Песенная активность разноцветных нектарниц интенсифицируется лучшей подкормкой. А. Характерные позы самцов, исполняющих полную песню (а, b) и подпесню (c, d). Прорисовки по фото. Б. Продолжительность подпесни (левая ордината, мин) и абсолютная частота строф полной песни (правая) в зависимости от концентрации сахарозы (абсцисса), представлены медианы. Врезка — внегнездовой сезон, остальное — период ухаживания. Значимые различия в активности между последовательными концентрациями сахарозы: для подпесни и полной песни между 1/8 и 1/4 моль/л (p=0,02). В. Продолжительность пения (мин) в зависимости от концентрации сахарозы в брачный сезон (белые кружки) и вне его (чёрные). Г. С ростом концентрации сахарозы (абсцисса) учащается использование полных песен с большим числом строф (ордината — частотное распределение песен по этому параметру, размер чёрных квадратов ∼ числу измерений). Представлены медианы. Д. Зависимость между числом строф в ухаживании с полной песне и общим числом строф в репертуаре при концентрациях сахарозы 1/32 М (треугольнички) и 1/4 м (кружки).
У разноцветной нектарницы Cinnyris venustus изучали влияние концентрации сахарозы в растворе для подкормки на брачные демонстрации и песенную активность во время ухаживания. Её рост удлиняет песни территориальных самцов, поднимает разнообразие их элементов, они поют всё большую часть репертуара напевов. Растет частота исполнения полной песни, подпесни же падает, но поменьше, почему общее время пения также растëт. Кроме вокальных демонстраций, рост концентрации сахарозы интенсифицирует визуальные: пропорционально ему растёт число песен, исполненных с специфическим взъерошиванием оперения подбородка, горла и груди, их <10 при 1/8 М и 16-18 при 1/2-1 М (различия значимы, p=0,02). (Karl et al., 1982).
Видим: чем больше ресурсов в распоряжении самца, тем полней он развёртывает видовой репертуар брачных демонстраций и с большей устойчивостью «выдаёт» их вопреки разным «помехам» (см. «20 фактов об инстинктах«, факт 20). Коммуникативно значимы лишь завершённые демонстрации, исполненные на должном уровне стереотипности: отсюда избытки ресурсов в обычных местах демонстрирования не только поднимают успешность коммуникации резидентов (и, опосредованно, их размножения), но делают её вообще возможной.
Последний эффект фиксируется практически у всех позвоночных. Так, брачные демонстрации славки-портнихи (Cisticola juncidus) и экстравагантны, и энергетически дороги. В сезон размножения каждый самец строит на своей территории по нескольку гнёзд и привлекает самок демонстративным полётом на высоте 5-25 м, на пике сопровождающимся одиночным криком и хлопаньем крыльев (McGregor et al., 1990). Наблюдения за 8 самцами на юге Португалии, активно токующими и охраняющими территории, выявили большие различия по числу/продолжительности самых «расточительных» воздушных демонстраций и длительности вокализации в полёте, видимо, связанные с «качеством» самца; различия в пении на присаде меньше, но также значимы (рис.3).
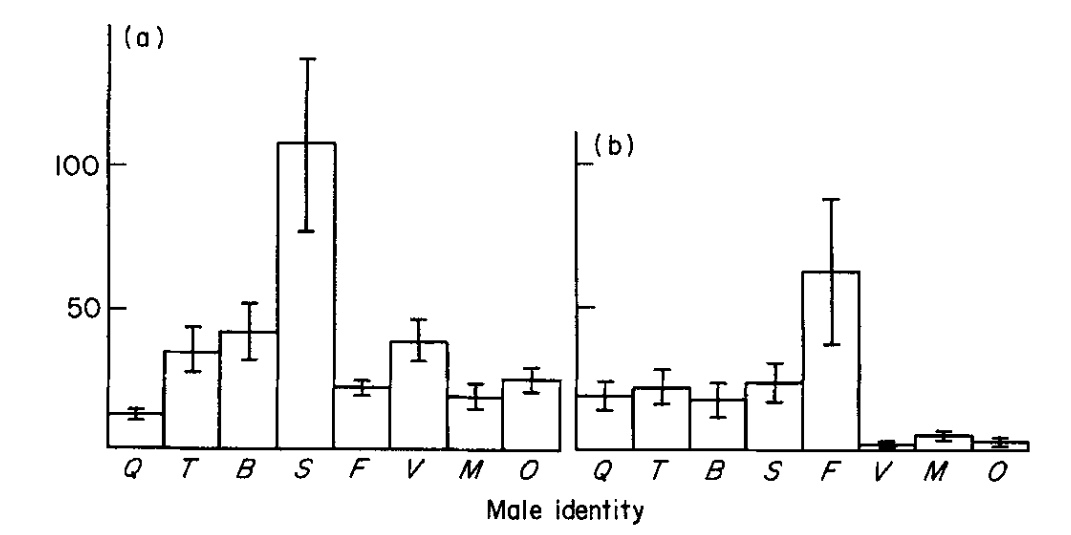 Рисунок 3. Разнокачественность самцов славки-портнихи сильней выражена в самых энегрозатратных демонстрациях. Показана длительность демонстраций в воздухе (а) и на присаде (b) 8 резидентов, бывших под наблюдением. Каждого наблюдали в целом по 5 ч, средняя ±SE, рассчитаны для n=10 отдельных периодов наблюдений по 30 мин.
Важен был и эффект Олли4: самцы с большим числом соседей дольше демонстрировали и громче пели в полёте; песня на присаде намного тише, её связь с числом соседей не положительная, а отрицательная (McGregor et al., 1990, table 1 и 2). Качество территорий оценивали по доле площади охраняемого пространства, занятого оптимальным кормовым биотопом — плотными зарослями кустарников; различия в нём лишь иногда коррелировали с разницей структуры брачных демонстраций (McGregor et al., 1990).
Следовательно, брачные демонстрации славки-портнихи — комплексный сигнал, «отталкивающий» сексуально активных соседей вон с территории при одновременном «осаживании» самок на том же пространстве. Площадь охраняемого пространства здесь функция устойчивости издавания сигналов владельцем, сопоставляемой (самками или соседями) с издаванием их же соседями, «вытолкнутыми» из него более интенсивными и бесперебойными демонстрациями данного самца. В любом случае функция этого сложного и энергозатратного ритуала (брачный полёт + вокализация) суть информирование потенциальных компаньонов в едином процессе распределения территорий и образования пар – как самцов, так и самок, вовсе не «просто» выражение сексуального возбуждения демонстратора.
Поскольку коммуникация – предмет роскоши, животные сокращают её до необходимого минимума, используют только в тех проблемных ситуациях, где выбор действий без обмена сигнальной информацией немыслим (в том числе выбор на основе специфических побуждений «внутри» особей). При малейшем ухудшее ресурсообеспеченности животные демонтируют и этот минимум, взаимодействуя «экономно». И наоборот, у людей это немыслимо: символическое поведение, используемое для коммуникации, пронизывает все сферы социального бытия, на этом не экономят, наоборот: она интеннсифицируется при обострении трудностей, что даёт шанс на общественные изменения, могущие их разрешить.
И так как коммуникация — “предмет роскоши”, телодвижения-предшественники демонстраций «доводятся» отбором на ритуализацию5 до уровня стереотипности и шаблонности исполнения, присущего «настоящим сигналам», лишь при необходимости именно информировать партнёра, а не воздействовать на него. В огромном большинстве случаев это вызвано невозможностью или неэффективностью собственного наблюдения за ситуацией: реакция на сигналы, ретранслируемые по коммуникативной сети, быстрей, безопасней и легче.
Тогда часть двигательных реакций, вовлекаемых напрямую в это взаимодействвие (участники вынуждены их различать, как боксёры — категории ударов и типы движений) типизируется и дискретизируется до уровня «настоящих сигналов» и их «материальных носителей», демонстраций, информирующих оппонента о способах реагирования, доступных обоим на каждом «шаге» процесса, и оставляющих им свободу выбора, а не просто принуждают «давлением» к «нужному» реагированию. Данные онтогенеза показывают, что это прямые действия, вроде движения силовой борьбы у чайчат L.ridibundus (факт 6) или чисток/закатываний глазного яблока у лорикетов р.Trichoglossus (Serpell, 1989), но вряд ли экспрессивные реакции, как я считал изначально.
Скажем, у разных видов макак дифференцированные системы пищевых или тревожных сигналов отсутствуют, крики, издаваемые в соответствующих ситуациях, неспецифичны (Dittus, 1984). Только у львинохвостого макака-лапундера Macaca silenus вокализации высоко дискретны (почему хорошо различимы) и чётко привязаны к конкретной ситуации или социальному взаимодействию. Репертуар их богат (17 основных криков) Обнаружено 2 специфических сигнала, отсутствующих у других видов рода: «громкий» крик самца, оказавшегося в изоляции, и крик самца во время копуляции. Оба сигнала направлены на информирование группы о том, что происходит с теми особями, которые непосредственно не видны из-за густой растительности (Hohmann, Gerzog, 1985).
Эти особенности вокализаций лапундера хорошо согласуется с биотопом и социальной организацией вида. Макаки живут в густых зарослях дождевого тропического леса, редко спускаются на землю, зрительное общение в стаде резко ограничено и компенсируется прогрессом вокальных сигналов, вновь обретающих специфичность (Dittius, 1984) и т.п. Подчеркну: вся совокупность отличий сигналов лапундера от других видов макаков — дискретность вокализаций, высокая дифференцированность разных сигналов между собой, низкая частота, большая длительность и повторяемость отдельных звуков обеспечивают надежность акустической коммуникации, ставшей ведущей (Hohmann, Gerzog, 1985).
Отсюда биологический смысл коммуникации животных состоит в «добывании» полезной информации, необходимой для прогрессивного увеличения адекватности собственной модели поведения особи в следующие моменты её жизни в сообществе, исходя из предшествующих «шагов» взаимодействия со своим окружением, и ответа партнёра (-ов).
Примечания
1Экономика людям даёт прибавочный продукт, расходуемый на выстраивание более сложных и разнообразных форм социального взаимодействия (из которых, в свою очередь, следуют более эффективные способы организации общественного производства). Так возникает свободное время для почти бесконечных бесед, предпосылок науки и философии, позволяющих прояснить сложные вопросы до конца хотя бы каким-то общественным слоям. Традиционно прогресс и рост благосостояния связывался с уходом от необходимости много и тяжело работать, с ростом свободного времени для досуга, который человек тратил бы на саморазвитие, самореализацию, и общественно полезную деятельность вместе с другими. Людям на общении можно не экономить (сорри за тавтологию), ибо оно вплетено в ткань социальной жизни и неотделимо от производственных отношений в широком смысле слова, а не параллельно и дополнительно к ним, как у животных.
2«Зачем большим пёстрым дятлам…», op.cit.
3 Половому и социальному: их можно разделить, но не противопоставить друг другу ввиду причинной связанности в годовом цикле, см. «Взаимоотношения полов у позвоночных и модели полового отбора», https://www.socialcompas.com/2019/12/15/vzaimootnosheniya-polov-u-pozvonochnyh-i-modeli-polovogo-otbora/ ; «Социальный отбор против полового у чёрных лебедей и пеганок», https://www.socialcompas.com/2025/10/02/sotsialnyj-otbor-protiv-polovogo-u-chyornyh-lebedej-i-peganok/
4Недонаселение также опасно для популяции, как и перенаселение. Ухаживание и далее размножение особей в группировках (на токах, в колониях и полуколониях, на полифункциональных территориях, более или менее сближенных в пространстве и пр.) начинаются лишь при плотности выше некоторой критической и в окрестностях этого порога положительно связаны со значением плотности, также как выживаемость и приспособленность особей . Назван в честь американского эколога Уордера Клайда Олли.
5Критики этологии, начиная с Е.Н.Панова, отбор на ритуализацию оспаривали вместе с другими концептами нашей дисциплины (правда, их аргументация касалась лишь ритуализации «по Тинбергену», но не «по Благосклонову», см. https://www.socialcompas.com/2016/10/14/blagosklonov/ ). Однако в конце концов они вынуждены признать ритуализацию форм демонстраций, см. завершение обзора «судеб сравнительной этологии» (Панов, 2005) и монографию «Лебеди мира. Структура и эволюция сигнального поведения» (Панов, Павлова, 2015), не соглашаясь лишь с их семантичностью. Наш сценарий эволюционного происхождения видовых демонстраций, сопрягающий ритуализацию формы с обретением поначалу релизерности, а затем и сигнальности действия их специфическимх образов, см. Фридман, 2013 и заключение.
Похожие записи
Про доказательства полового отбора у амфибий
Снова о происхождении ковида
«Ложные зевы» и другие сверхстимулы кукушат
«Вращения» лебедей-шипунов: синхронизация движений соседей как [ритуализованный] инструмент охраны территории
Как волны жары усиливают пожароопасность в лесах
История зелёных насаждений Владивостока как арены синурбизации птиц