Индексный знак в сигналах тревоги гаичек

 Print
 PDF
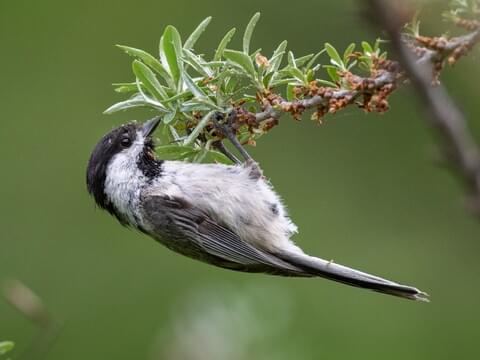
Ряд видов в коммуникации используют индексный знак, а не символы. Таков, например, «язык» предупреждения об опасности черноголовых гаичек (Templeton et al., 2005).
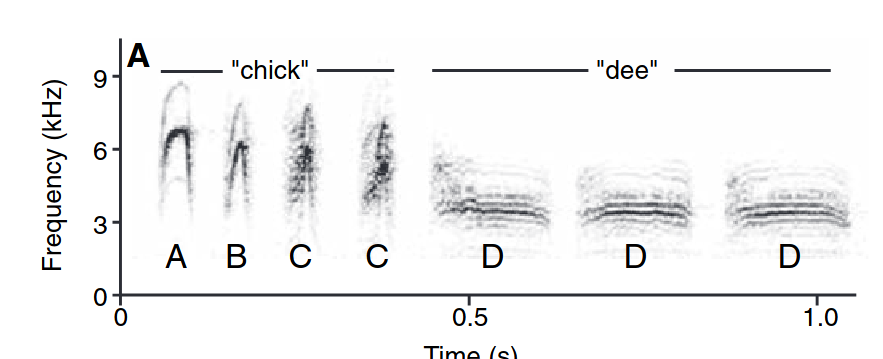
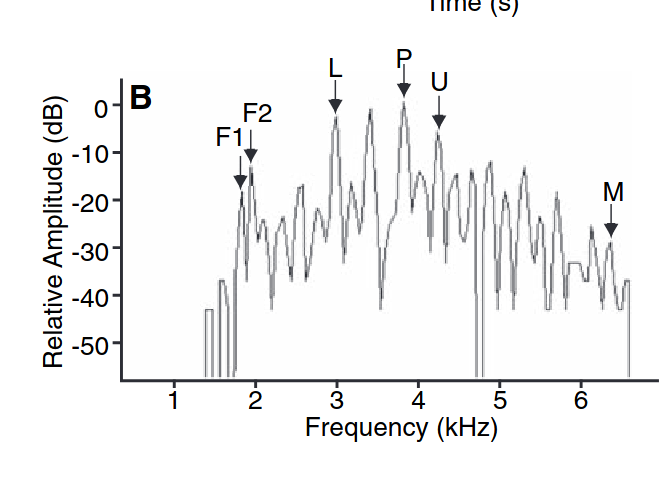
В отличие от исследования L.Beletsky (1989) акустическая структура тревожных сигналов здесь прямо связана с характером передаваемой информации (рис.1).
1.
2.
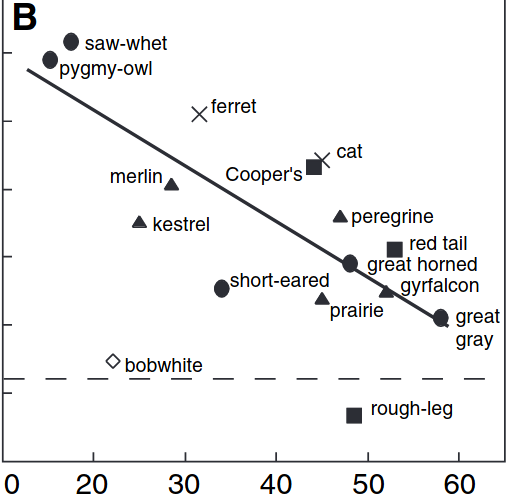 3.
Рисунок 1. 1. Характеристики крика гаичек «ци-ци-хее»: «ци-ци» — слоги А-С, «хее» — слог D сонаграммы. 2. Интенсивность акустической стимуляции (относительная амплитуда, шкалирование по обертону с наибольшей энергией, 0 Дб) в зависимости от частоты, определённая по спектру мощности в центре слога «хее». Р — пиковая частота; L — нижняя и U — верхняя границы частотного диапазона на уровне –10 дБ; F1 — частоты первого и F2 — второго пиков на уровне –30 дБ; а также максимальная частота пика (M) на уровне – 30 дБ. 3. Кодирование информации о степени опасности в криках тревоги черноголовых гаичек. Обозначения. Ордината — среднее количество слогов «хее» как функция размаха крыльев возможных пернатых хищников в см (А; регрессия y = 4.4 — 0.02x; R2 = 0.512, P < 0.0001) и размера тела возможных пернатых и наземных хищников (В, регрессия y = 4.4 — 0.4x; R2 = 0.361, P < 0.0001). Символы — разные группы хищников: ● — совы, х — млекопитающие, ■ — ястреба, ▲ — сокола. Пунктир — интенсивность вокализации в ответ на контроль (виргинский перепел Colinus virginianus). Примечание. А — «размер» и «ловкость» одновременно; характеристики разных видов хищников (вес, длина тела, размах крыльев, время активности, рацион) см. табл.1 работы. Источник. Templeton et al., 2005.
Когда хищник уже заходит сверху, гаички издают высокое «циит» и прячутся. Когда он сидит на ветке или земле, гаички издают крик тревоги «ци-ци-хее-хее», давший начало английскому названию птиц (chick-a-dee). Сильнее всего кричат взрослые самцы и самки, потерявшие из виду партнёра и увидевшие сидящего хищника, т.е. предупреждение адресовано другим птицам в стае, с которыми кричащая гаичка связана социальными связями. Это сигнал, распространяющийся по коммуникативной сети, а не индивидуальное выражение страха.
При встрече с опасностью особь оценивает уровень риска и выражает в сигнале (рис.1), пусть даже хищник ей незнаком или непривычного облика (Templeton et al., 2005). Число «хее» указывает на его обобщённые характеристики: «размер» и «вёрткость», т.е. риск гибели закодирован в общей «шкале», включающей даже хищников, прежде не виданных или новых для птиц (рис.1). Важно взаимно однозначное соответствие означаемого и означающего в «языке» гаичек и его обязательность для зимних стай: «честность» сигналов заложена в ней, а не «устанавливается» (или нет) конкретными птицами.
Крики тревоги исследователи записывали от вольерной стаи из 6 птиц. При помещении к ним безопасного перепела гаички не издавали каких-либо криков, опасного хищника (ястреба или совы) — немедленно издавали «ци-ци-хее-хее», хотя кричащие сами рискуют. Ловкий хищник небольшого размера (воробьиный сыч-гном Glaucidium gnoma) вызвал максимум звуков «хее» (>4), крупный и грузный, малоопасный (виргинский филин) — минимум, 1-2. Так устанавливается связь между числом «dee» в составном крике и абстрактной оценкой «общей опасности» объектов, относимых птицами к хищникам по параметрам «размера» и «ловкости» (рис.1).
Вывод проверили, проиграв записи криков другой группе гаичек. Они реагировали строго по схеме «более опасный хищник → больше слогов «хее»: зависимость зависимость их числа от «размера» и «опасности» хищника у тестируемых синиц та же, что у источников сигнала (рис.2).
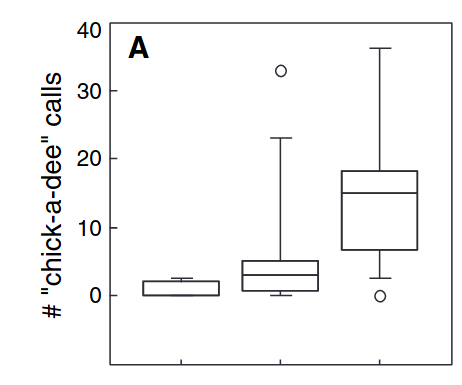 А.
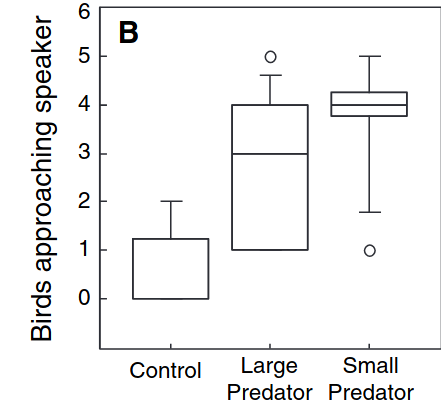 В.
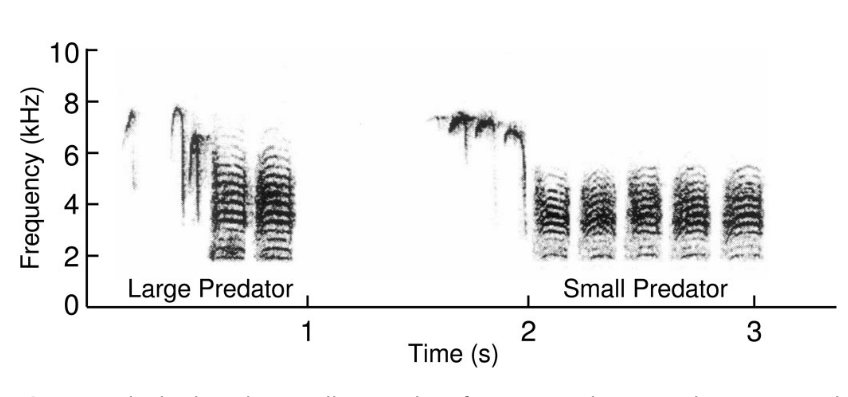
С.
Рисунок 2. Реакция гаичек на проигрывание тревожных сигналов с разным числом криков «хее», т.е. «маркирующих» разных хищников (рис.1). Абсцисса слева направо: контроль (крики соснового чижа); крики, изданные на крупного и малоподвижного хищника vs мелкого и ловкого хищника (их сонаграммы см. С); Ординаты в А — интенсивность ретрансляции сигнала, число «ци-ци-хее», изданных после проигрывания; в В — число птиц, приблизившихся к источнику звука на <3м. На «ящиках с усами» — медиана, межквартильный размах, общий разброс данных и выбросы; различия между категориями значимы по U-критерию Манна-Уитни, Р<0,05. Источники: А, В — Templeton et al., 2005, С — Templeton, Greene, 2007.
Всё это делает звуки «хее» специализированным «языком» на основе индексных знаков, обслуживающим информационный обмен о «степени опасности» объектов, идентифицируемых как «хищники». Особи им только «пользуются» с разным уровнем «честности» и эффективности использования. А дальше — отбор снижает выживаемость гаичек, хуже отреагирующих сигналы, или воспроизводящих неточно (особенно молодых, с большим уровнем общего возбуждения и сниженной стереотипностью), или не рискующих ради окрикивания/ретрансляции.
При проигрывании криков тревоги кормящейся стае буроголовых гаичек (пухляков) P.montanus («рассыпавшейся» при кормлении на десятки м внутри лесного полога) взрослые немедля затаиваются, часто ещё и ретранслируют крик, без попыток чаще осматриваться или проверить реальность угрозы как-то ещё. Как и у P.atricapillus (Templeton et al., 2005), крики тревоги пухляка содержат два компонента, информирующий о характере опасности и о дистанции до неё или о скорости её приближения к стае (Фридман, 2013).
При первом птицы «автоматически» прерывают кормление и по-разному затаиваются (в зависимости от вида хищника), то есть «доверяют» сигналу (Rajala et al., 2003). В ответ на второй затаиваются лишь гаички, которых опасность застигнет вот-вот (т.е. воспринимают крик как сигнал бегства). Птицы, находящиеся подалее (отделённые от опасности птицами первой категории) затаивались и ретранслировали сигнал, то есть информировали сообщество по коммуникативной сети. Реакция молодых была столь же «автоматической», но замедленной — прежде чем начать моббинг и/или затаивание, ещё несколько с они продолжали прежние действия (Rajala et al., 2003).
В иерархической организации стаи молодые (особенно самки) занимают подчинённое положении и при кормлении вытесняются в микростации на периферии кроны, менее кормные и более рискованные. Это главный фактор смертности подчинённых, при устранении доминантов немедля перемещающихся в лучшие микростации, с понижением смертности (данные по зимним группам пухляков и
черноголовых гаичек, Hogstad, 1988; Ekman, 1990, цит. по Фридман, 2013).
Немедленная и точная реакция взрослых на сигналы тревоги явно не связана с индивидуальным опытом или какими-то эффектами обучения, иначе не была единообразной и не реализовывалась бы без попыток самостоятельно выяснить, не кричит ли особь-источник сигнала «Волки!» напрасно… Ведь прерывать кормление без явной угрозы жизни крайне невыгодно, зимой особенно. Поэтому переход от замедленной реакции на сигнал к немедленному и точному ответу взрослых птиц — продукт отбора, устранившего из популяции всех недостаточно «доверяющих» сигнальной информации или недостаточно реактивных птиц, а не обучения.
Авторы посчитали, что эта система коммуникации самая совершенная и при большей тщательности анализа её аналоги будут найдены у многих видов птиц. Действительно, сигналы тревоги синиц «понятны» канадскому поползню Sitta canadensis, в их стаях обычному, но не родственному гаичкам (контролем был крик домового воробья). В отсутствие хищников на «хее» гаичек поползни реагировали так же точно и специфически, как на реальную опасность.
Крики на мелкого и вёрткого хищника вызвали больший % приближений среди протестированных поползней, чем на крупного и малоподвижного, не говоря о контроле (92%, 69%, 23%, различия между вариантами опыта значимы, критерий Кохрана C = 9,80, n=13, P = 0,003, Templeton, Greene, 2007, fig.2). Прилетая на дерево с динамиком, птицы спускались к нему: при проигрывании первых криков они приближались сильней (дистанция по вертикали в среднем 3 м с разбросом 2–10 m), чем вторых (9 m, 3–12 m). Различия значимы по ранговому критерию знаков Вилкоксона, Z=2.493, n=20, P=0.006 (Templeton, Greene, 2007, fig.3).
Аналогично крики «на мелкого хищника» вызывали у поползней значимо больше резких взмахов крыльев (признак высокого возбуждения), чем крики «на крупного» (79% и 32%, С=14,0, n=13, P=0,004). Контрольные их не вызывали вообще, при незначимости различий в эффекте со вторым вариантом (Templeton, Greene, fig.4). Готовность к реакции на крик гаичек (время задержки до перелёта к динамику) была одинакова в обоих вариантах опыта, т.е. различия между ними не объяснить «знанием» поползнями разной опасности данных хищников, это именно восприятие информации из криков «хее».
Конечно, такие системы коммуникации вполне обычны для птиц и многажды описаны выше, интересно только использование индексных знаков, а не символов (в классификации знаков Ч. Пирса, Барулин, 2002).
Такое же понимание «языка» близких видов присуще приёмным детенышам макак (японских M.fuscata и резусов M.mulatta) и саймири, воспитанных в группах близкого вида того же рода (Newman, Symmens, 1982; Owhren et al., 1992). Cаймири имеют систему дифференцированных сигналов-символов, соответствующих альтернативным типам опасностей (угроза с воздуха, с земли и пр.), изоморфную выявленной Сифартом и Чини у верветок. «Обозначающие» их крики у каждого из двух видов саймири видоспецифичны, но гомологичны и довольно сходны по форме, различия чисто количественные. Сигналы тревоги одного вида с разной семантикой, как и положено, чётко дифференцированы друг от друга, их формы взаимно альтернативны.
Крики тревоги обоих макаков видоспецифичны по форме, но не информируют о разных типах опасностей, а выражают разные уровни общего возбуждения и/или силу стресса животного в захватившей его ситуации. Иными словами, у них уже нет специфической функции. Поэтому их форма намного изменчивей, разные крики связаны переходами и т.п.
Вырастая с приёмными матерями, обезьяны в обоих случаях полностью сохраняют видоспецифичность криков. Они выучивают сигналы «приёмного» социума, адекватно на них реагируют, но сами не издают никогда, хотя голосовой аппарат их воспроизводит легко путём подражания. При этом в одновидовых группах весьма высока готовность воспроизводить крики, вообще эмоциональные реакции других обезьян. Чтобы издать так «чужие» сигналы надо только чуть-чуть изменить «шаблон», задающий акустическую форму крика — однако же нет, видимо, они врождённые, «как положено» для инстинктивных реакций (Newman, Symmens, 1982; Owhren et al., 1992, цит. по: Фридман, 2013).
Хотя здесь приëмыши в полной мере «свои» (члены данного социума), видовые границы форм демонстраций ненарушимы в обоих случаях. Они никогда не «обозначали» тревожную ситуацию «чужим» сигналом, конспецифики делали это автоматически. Приёмные родители также вполне понимают сигналы тревоги детёнышей другого вида, но не пытаются сигнализировать им «чужими» сигналами, лишь видовыми (Newman, Symmens, 1982; Owhren et al., 1992).
Похожие записи
Коммуникация животных как «предмет роскоши»
Про доказательства полового отбора у амфибий
Снова о происхождении ковида
«Ложные зевы» и другие сверхстимулы кукушат
«Вращения» лебедей-шипунов: синхронизация движений соседей как [ритуализованный] инструмент охраны территории
Как волны жары усиливают пожароопасность в лесах