Про доказательства полового отбора у амфибий

 Print
 PDF
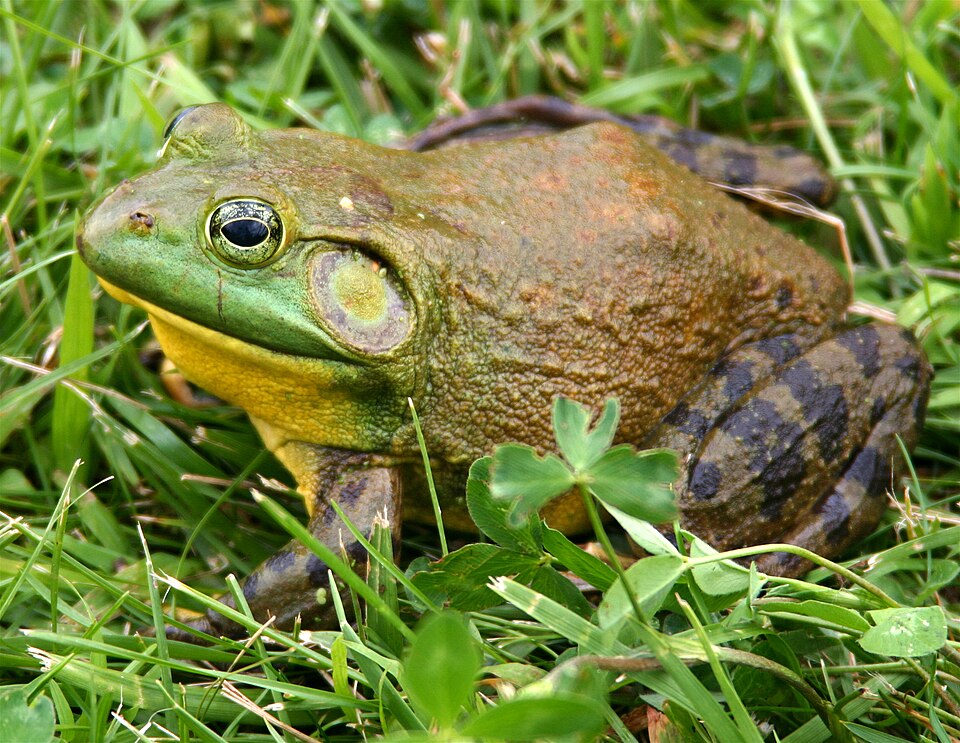
Активный выбор самками лягушек и жаб брачных партнёров имеет место у минимального числа видов, у подавляющего большинства то, с кем именно спаривается самка — пассивное следствие конкуренции самцов за территорию или за статус (возможность подавать брачный крик, не обращая внимания на вокализацию соседей, альтернатива — «встраиваться» в «окна» между их криками.
Для доказательства выбора самок и тем более его адаптивности нужно показать, что
1) они не спариваются случайно,
2) эта неслучайность возникла вследствие поведения самки, а не конкуренции между самцами,
3) сделанный выбор в общем случае адаптивен для самки, т.е., самка, спаривающаяся с выбранным самцом, больше готова к размножению (если готова не очень, это может быть просто следствием релизерного эффекта брачных криков самца, как описано для девятиглой колюшки).
Все три условия соблюдаются у лягушки-быка Lithobates catesbeiana, где самцы занимают индивидуальные участки, самки выбирают самцов и сезон размножения длителен, т.ч. есть время на пробные «сближения». Сокращение брачного периода ликвидирует возможность выбора самок, они спариваются с тем самцом, «на которого выйдут здесь и сейчас», успех спаривания детерминирован соотношением размеров тела партнёров. Выбор самца по особенностям брачного крика в этом случае адаптивен для него, но не для самки, проигрывающей «войну полов». См. Tim Halliday, 1983. Do frogs and toads choose their mates?
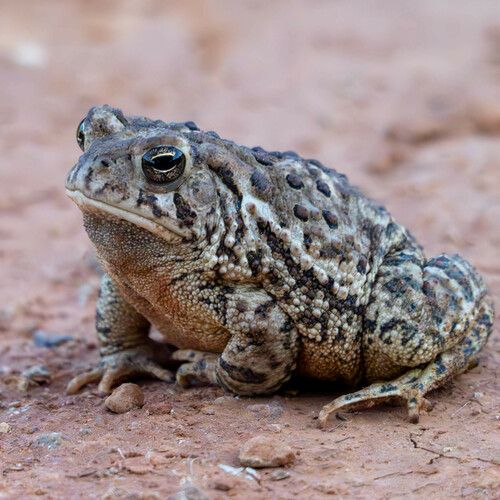
Так, в длительно нерестящейся популяции жабы Вудхауза Bufo woodhousei australis Центральной Аризоны в 1981-1982 гг. также был продемонстрирован выбор.
Сигнал, по которому она ориентируется — темп повторения брачного крика самца (в том числе размножающиеся самцы кричали значимо чаще не участвующих в размножении: 4.6 раз/мин против 3.7 раз мин). Последний устойчив, не зависит от небольших колебаний температуры или размеров самца, но характеризует его и до некоторой степени привлекательность нерестового водоёма и/или плотность группы самцов. В плотных группах он устойчиво выше у всех их членов, т.е. частота подвержена социальному влиянию. Поэтому вариация темпов подачи крика у разных самцов существенно выше, чем у одного и того же самца в разных условиях или в разные моменты времени; то же самое верно для средних значений по хору.
Предъявление самкам, вынутым из амлексуса, записей криков с разным темпом подачи, показывает ориентацию по ним, а не по размерам самца, крик которого воспроизводили. Вообще, успешность участия самца в размножении не зависит от его размера, с учётом «отсечения снизу»: самцы <72 мм длины не обнаруживались в амплексусе. См. Sullivan Brian K. 1983. Sexual selection in Woodhouse’s toad (Bufo woodhousei). II. Female choice
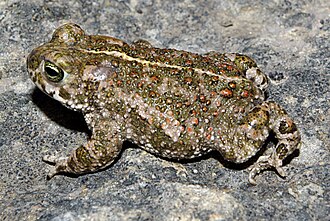
Именно использование сигнальных форм выражения мотивации удлиняет период копуляции и, как у певчих птиц, оптимизирует выбор партнёров, распределяя «ищущих» самок между самцами пропорционально их «качеству». Данные по камышовой жабе Bufo calamita показывают, что последнее определяется в ходе коммуникации. Её выигрывают самцы с низкой частотой брачного крика: они получают возможность его чаще и устойчивей подавать. «Худшие» же, проигрывая, чаще нападают на лучших, особенно если они крупнее, т.е. успешность сигнального поведения не есть просто функция размеров и прочей морфологии; как и птиц, ящериц и пр. позвоночных, важен «синтаксис». Жаб наблюдали в 1980-1983 гг. в национальном природном резервате Эйнсдейл и природных резерватах Мерсисайд и Эскмилс, Камбрия. Под наблюдением был 21 самец, населяющий маленький пруд, всех пометили индивидуально. «Лучший» самец спаривался с 7 самками, двое «худших» вообще не смогли размножиться. См. Arak Antony, 1983. Sexual selection by male-male competition in natterjack toad choruses
Зачем я привёл эти работы, уже очень старые? Потому что Е.Н.Панов в интереснейшей книге про «половой отбор: теория или миф?”, потрясающей изобилием “обозрённого” материала, всяко старается доказать, что его нет. В этих попытках он “убил” массу парадных примеров полового отбора и социобиологии вообще, за что большое спасибо. Евгений Николаевич — классик; как ни относись к его концепциям и особенно способам их утверждения, закрепившимся в последние годы (второе намного хуже первого), его книги дают сумму знаний, на порядок большую чем в других той же тематики, будят мысль пропорционально переданным сведениям, чем и хороши.
Увы, он совсем не обсуждает исследования, которые не может дезавуировать, даже если их большинство (также как в исследованиях знаков и символов в коммуникации животных). Причём он отлично знает работы Тима Холлидея по ухаживанию у обыкновенного тритона 1970-х гг. (где, кроме коммуникативной роли обмена демонстрациями, обсуждается также проблема “свободы выбора” партнёров), и даже цитирует их в “Механизмах коммуникации у птиц”. Их сложно не знать, ибо стали классическими, цитируемыми во всех руководствах, и даже популярных книгах (Мак-Фарленд. “Поведение животных”). Умолчание о “неубиваемых” подтверждениях критикуемой тобой концепции (или упоминание их как незначащих, мимоходом, как с опытами Андерссона над хвостом самцов ткачика-вдовушки) совершенно нехорошо, почему я их и цитировал.
Похожие записи
«Ложные зевы» и другие сверхстимулы кукушат
Инстинкт vs стереотип в коммуникации птиц
Про европейские ценности
Глобальное потепление усиливает погодные экстремумы
По следам наших выступлений…
Оборотная сторона социальной истории